

植物が過酸化水素シグナルを感知する仕組みを解明
銅イオンに依存した新たな酸化還元状態の感知機構
研究成果のポイント
概要
名古屋大学トランスフォーマティブ生命分子研究所(WPI-ITbM)のAnuphon Laohavisit(ラオハビシット アヌポン) 特任准教授、藤本 和宏 准教授、柳井 毅 教授、東海国立大学機構イノベーションコアファシリティセンターの伊藤 広樹 技師、西村 真弓 技師、理化学研究所 環境資源科学研究センターの石濱 伸明 研究員、白須 賢 副センター長、大阪大学 大学院薬学研究科の福田 庸太 助教、井上 豪 教授らの共同研究グループは、植物が重要なシグナル分子である過酸化水素(H₂O₂)を感知する新たな仕組みを解明しました。
H₂O₂に代表される活性酸素種(ROS)は、植物を含む多様な生物において重要なシグナル分子として機能します。植物では、ロイシンリッチリピート(LRR)受容体様キナーゼをコードするCARD1(別名HPCA1)が、H₂O₂の感知に必須な遺伝子として同定されています。しかしながら、CARD1がH₂O₂を感知する仕組みには多くの謎が残されていました。今回、共同研究グループは、構造生物学、遺伝学および生化学的手法を組み合わせてその解明に取り組み、CARD1細胞外領域のLRRドメイン上に結合した銅イオンが、H₂O₂の感知に必須であることを明らかにしました。本成果は、植物におけるROS認識機構の理解を大きく前進させるとともに、新たな作物保護技術の開発にも貢献することが期待されます。
本研究成果は、2026年5月18日18時(日本時間)付で英国科学誌『Nature Communications』に掲載されました。
研究の背景と内容
自ら移動することができない植物は、外部環境の変化を細胞表面の受容体によって感知し、それに応答することで、日々変動する環境に適応して生きています。植物がもつ受容体の中でも、ロイシンリッチリピート(LRR)受容体様キナーゼは、多様性に富んだ巨大な受容体ファミリーを形成しており、多種多様なリガンドの認識を可能にしています。
本研究で対象としたCANNOT RESPOND TO DMBQ 1(CARD1、別名HYDROGEN-PEROXIDE-INDUCED Ca²⁺ INCREASES 1;HPCA1)は、植物のストレス応答や免疫応答において重要な役割を担う、キノンおよび過酸化水素(H₂O₂)の感知に必須な受容体です。従来、CARD1の細胞外領域に集積する特徴的なシステイン残基は酸化還元感受性を有すると考えられており、H₂O₂処理後にこれらのシステイン残基がジスルフィド結合することが、シグナル認識の引き金として広く受け入れられてきました。しかしながら、このモデルは、一般に還元力に乏しい細胞外環境においてシステイン残基が還元状態で維持されることを前提としており、その点に無理がありました。
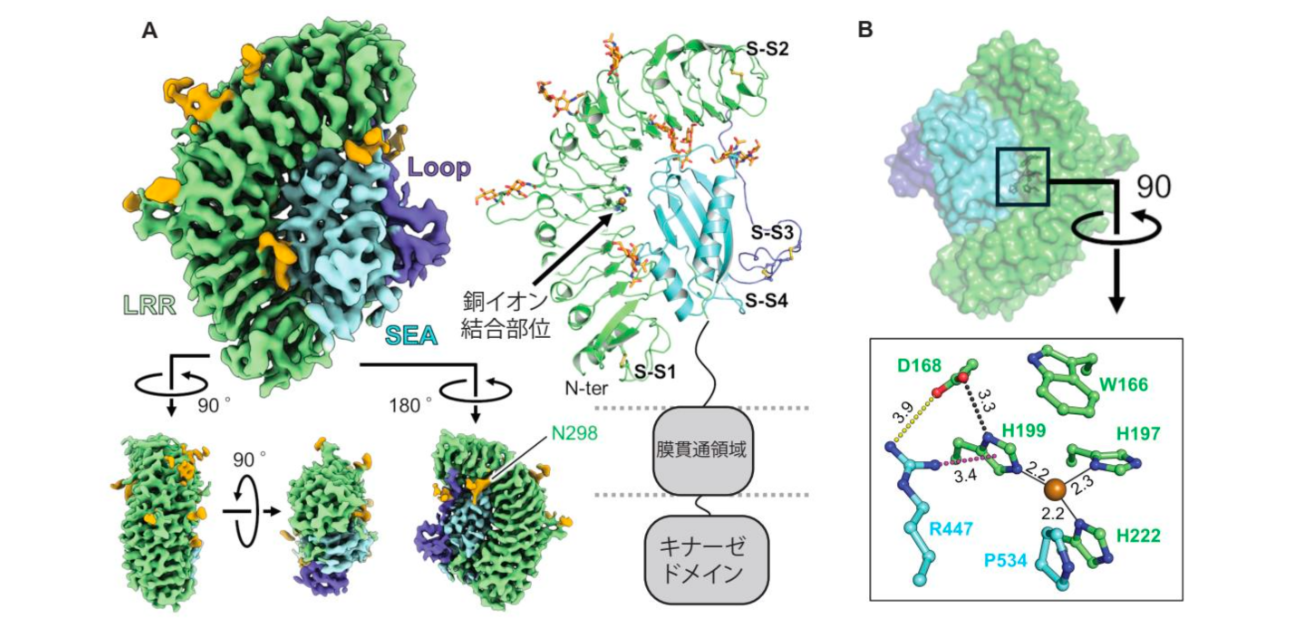
CARD1が属するサブファミリーVIII-1型のLRR受容体様キナーゼについては、これまで立体構造が実験的に決定された例がなく、それがCARD1によるシグナル分子認識機構の理解の進展を妨げていました。そこで共同研究グループは、ベンサミアナタバコを用いてCARD1の細胞外領域(EctoCARD1)を発現し、その立体構造を決定しました(図1A)。その結果、CARD1は、LRRドメインに加えて、4本のβストランドと2本のαヘリックスからなるSEAドメインに相同性をもつ構造がループ領域によって連結された、ユニークな構造を有することが明らかになりました。CARD1に特徴的なシステイン残基はこのループ領域に存在し、それぞれ421番目と434番目(図1A中のS-S3)、および424番目と436番目(図1A中のS-S4)のシステイン残基間でジスルフィド結合を形成していました。この組み合わせは、先行研究で提案されていたものとは異なっていました。また、シロイヌナズナcard1変異体を用いた相補試験により、これらループ領域内のシステイン残基がH₂O₂応答に必須ではないことも明らかにしました。
さらに共同研究グループは、LRRドメイン上に3つのヒスチジン残基(His-triad)によって配位された銅イオンが存在することを見いだしました(図1B)。また、シロイヌナズナcard1変異体を用いた相補試験により、この銅イオンはH₂O₂応答に必須である一方、キノン応答には必須ではないことを明らかにしました。加えて、計算化学的解析から、この銅イオンは還元型(Cu⁺、一価の銅イオン)として存在すると推定されました。これにより、CARD1によるH₂O₂の感知には、CARD1上のCu⁺がH₂O₂と直接反応する可能性が示唆されました(図2)。以上の結果から、CARD1は銅イオンを利用した新たな酸化還元状態の感知機構を備えると考えられます。
図1. EctoCARD1のクライオ電子顕微鏡構造
(A)4つの異なる方向から示したEctoCARD1のクライオ電子顕微鏡マップ(左)とマップに基づく構造モデル(右)
(B)銅(Cu)結合部位を示したEctoCARD1の構造モデル。図中の数字はアミノ酸間や銅イオンとアミノ酸間の距離をオングストローム単位(1オングストロームは100億分の1メートル)で示したもの。
図2. CARD1の機能に関する作業仮説モデル
CARD1に結合したCu⁺は、H₂O₂とフェントン様反応(H₂O₂ + Cu⁺ → ・OH + OH⁻)を起こし、反応性の高いヒドロキシルラジカル(・OH)を生成すると考えられます。生成されたヒドロキシルラジカルは、リグニンなどのアポプラストに存在する分子種と反応し、キノンを含む二次的なシグナル分子を生み出します。これらの分子は、CARD1またはCARD1を含む受容体複合体によって認識される可能性があります。
成果の意義
今回、共同研究グループは、植物がH₂O₂を感知する新たな分子メカニズムを明らかにしました。本研究は、CARD1のH₂O₂感知機構として従来提唱されてきたシステイン残基依存型モデルの概念を大きく覆すものであり、特に銅イオンを利用した認識機構を示した点は重要な成果です。
ROSは、植物を含む多様な生物において細胞応答を制御する重要なシグナル分子であることから、本研究成果は、生物全般における新たなシグナル伝達機構の解明につながることが期待されます。さらに、植物における酸化ストレス応答の分子基盤の理解を深めることで、新たな作物保護技術の開発への貢献も期待されます。
特記事項
【論文情報】
雑誌名:Nature Communications
論文タイトル: A copper-dependent, redox-based hydrogen peroxide perception in plants
著者:Nobuaki Ishihama†, Yohta Fukuda†, Yumiko Shirano, Kazuhiro J. Fujimoto, Kaori Takizawa, Ryoko Hiroyama, Hiroki Ito, Mayumi Nishimura, Takeshi Yanai, Tsuyoshi Inoue, Ken Shirasu, Anuphon Laohavisit*
(石濱伸明†, 福田庸太†, 白野由美子, 藤本和宏, 瀧澤 香, 廣山涼子, 伊藤広樹, 西村真弓, 柳井 毅, 井上 豪, 白須 賢, ラオハビシット・アヌポン*) †は共同第一著者 *は責任著者
DOI:10.1038/s41467-026-72573-8
URL:https://www.nature.com/articles/s41467-026-72573-8
本研究は、日本学術振興会(JSPS) 科学研究費助成事業(基盤研究A)(JP22H00364:白須 賢)、同(基盤研究B)(JP24K01718:Anuphon Laohavisit、石濱 伸明、福田 庸太)、科学技術振興機構(JST) 創発的研究支援事業(JPMJFR220G:Anuphon Laohavisit)、同 革新的GX技術創出事業(GteX)(JPMJGX23B2:研究代表者 野村 暢彦、共同研究者 白須 賢)、文部科学省 共同利用・、共同研究システム形成事業 大学等研究卓越プログラム(CURE)(JPMXP1323015482:藤本 和宏、柳井 毅)、同 先端研究基盤共用促進事業(コアファシリティ構築支援プログラム)(JPMXS04411024:伊藤 広樹、西村 真弓)、三菱財団(Anuphon Laohavisit)、理化学研究所 最先端研究プラットフォーム連携事業(RIKEN TRIP)(白須 賢)の支援を受けて実施されました。
用語説明
- クライオ電子顕微鏡
生体試料を凍結し、極低温下で電子線を照射して3次元構造を撮影、解析する電子顕微鏡。通常の電子顕微鏡と比較して、より生体内に近い構造を観察できる。
- ヒスチジン残基
タンパク質を構成するアミノ酸の一つであるヒスチジンが、タンパク質中に組み込まれた状態を指す。ヒスチジンは窒素原子を有するイミダゾール環をもち、金属イオンと結合(配位)しやすい性質を有する。CARD1においては、ヒスチジン残基のイミダゾール環の窒素原子が銅イオンに対して三角平面型で結合している。
- 活性酸素種
活性酸素種(Reactive Oxygen Species; ROS)とは、酸素から生じる反応性の高い分子の総称で、H₂O₂、スーパーオキシド(O₂⁻)、ヒドロキシルラジカル(・OH)などが知られる。植物では、病原体の侵入や環境ストレスに応答して細胞外でROSが産生され、細胞応答を誘導する重要なシグナル分子として機能する。一方で、過剰なROSは生体分子を損傷し、細胞に障害を与えるため、その量は厳密に制御される。
- ロイシンリッチリピート(LRR)受容体様キナーゼ
細胞表面に存在する植物特異的な受容体様タンパク質の一種。細胞外にロイシンリッチリピート(LRR)と呼ばれる繰り返し構造をもち、この領域で特定の分子(リガンド)を認識する。細胞内にはキナーゼ(リン酸化酵素)ドメインを有し、タンパク質のリン酸化を介して細胞内にシグナルを伝達する。
- リガンド
特定の受容体に結合する分子のこと。リガンドが細胞膜上の受容体に結合すると、受容体の構造や状態が変化し、その情報が細胞内へと伝えられる。
- システイン残基
タンパク質を構成するアミノ酸の一つであるシステインが、タンパク質中に組み込まれた状態を指す。システインはチオール基(-SH)を含み、2つのシステイン残基間で形成されるジスルフィド結合は、タンパク質の立体構造の安定化や機能調節に重要な役割を果たす。
- 酸化還元
物質間で電子の受け渡しが起こる化学反応の総称。電子を失う反応を「酸化」、受け取る反応を「還元」と呼ぶ。生体内では、エネルギー産生やシグナル伝達など、多くの重要な過程に関与する。
- SEAドメイン
タンパク質中に見られるドメインの一つで、主に細胞外に存在するタンパク質に含まれる。名称は「Sperm protein, Enterokinase, and Agrin」に由来する。一部では自己切断(自己プロテオリシス)に関与することが知られている。
- 相補試験
特定の遺伝子機能を欠損した変異体に対して、正常な遺伝子や改変した遺伝子を導入し、失われた表現型が回復するかを調べる実験手法。遺伝子の機能を検証するために用いられる。
- アポプラスト
植物の細胞膜の外側に広がる空間を指し、主に細胞壁と細胞間隙から構成される。
